
Una planta no cura sus heridas: las encierra. Esa diferencia con un animal explica casi todo lo que ocurre después de una helada, una poda salvaje, un incendio o un mes de olvido en el riego. Donde nosotros regeneramos el tejido dañado, un vegetal levanta barreras químicas alrededor de la zona muerta, la aísla y sigue creciendo hacia fuera, generando tejido nuevo desde meristemos que estaban ahí antes del accidente. De modo que la pregunta correcta ante una planta arrasada no es si podrá curarse, sino si le queda algún meristemo vivo y alguna reserva con la que alimentarlo.
Con esa pregunta en la mano, distinguir lo recuperable de lo perdido deja de ser una cuestión de optimismo y pasa a ser una comprobación de cinco minutos.
Compartimentar, no cicatrizar
El modelo que describe lo que hace un árbol herido se conoce como compartimentación, formulado por el patólogo Alex Shigo a partir de miles de cortes longitudinales de troncos. Cuando se rompe una rama o se hace un corte, el árbol no rellena el hueco: deposita compuestos fenólicos y obtura vasos formando cuatro paredes que limitan el avance de la pudrición hacia arriba, hacia abajo, hacia el centro y hacia fuera. La cuarta pared, la más fuerte, la construye el cambium: es el tejido nuevo que crece a partir del momento de la herida y que forma ese rodete de callo que va cerrando el corte desde los bordes.
De ahí salen dos consecuencias prácticas. La primera es que la madera dañada nunca se recupera: queda dentro para siempre, y lo único que ocurre es que el árbol la envuelve. La segunda es que la calidad del corte determina la velocidad del cierre: respetar el cuello de la rama —ese ensanchamiento en la base, donde se concentra el tejido capaz de generar callo— es lo que permite que la herida se cierre; un corte a ras del tronco elimina esa zona y deja una puerta abierta a la pudrición durante años. Las pastas cicatrizantes no ayudan y a menudo empeoran las cosas al retener humedad.
Existe además una respuesta bioquímica de alerta. Ante un ataque, muchas plantas acumulan ácido salicílico —pariente químico de la aspirina— que desencadena la llamada resistencia sistémica adquirida: se activan genes de defensa en tejidos alejados de la herida y la planta queda temporalmente más preparada frente a nuevos ataques. Es un mecanismo real y bien descrito, pero conviene no confundirlo con una curación: prepara defensas, no reconstruye nada.
Los cuatro almacenes de rebrote
Lo que permite que una planta aparentemente muerta vuelva a salir es la existencia de meristemos de reserva, es decir, grupos de células capaces de dividirse que llevaban años inactivos esperando exactamente esto.
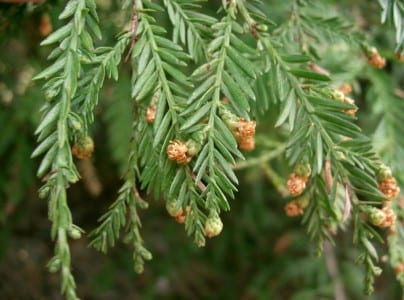
Yemas latentes bajo la corteza. Se llaman epicórmicas y son yemas formadas hace mucho que quedaron sepultadas por el crecimiento en grosor, manteniendo una conexión finísima con la superficie. Están inhibidas por las hormonas que envía la copa; cuando la copa desaparece, se desinhiben y brotan. Es lo que produce los chupones verticales tras una poda drástica, el rebrote de un olivo desmochado, el de la morera y el plátano de sombra tras el trasmocho, o el del Ficus carica, que rebrota de un tocón con una facilidad casi molesta. Entre las coníferas es una habilidad rarísima: la mayoría, cortada por debajo de la última verticilo de ramas verdes, no vuelve a brotar. Las excepciones notables son la secuoya roja (Sequoia sempervirens), que rebrota de tocón y forma círculos de hijos alrededor del padre muerto, y el pino canario (Pinus canariensis), capaz de recuperar la copa entera desde yemas del tronco tras un incendio que lo ha dejado negro. Un pino carrasco o un ciprés en esas mismas condiciones están muertos.
Cepa y lignotúber. Muchas especies mediterráneas guardan una masa leñosa engrosada en la base del tronco, bajo tierra, cargada de yemas y de almidón. Encina, alcornoque, coscoja, madroño, brezo, lentisco y mirto rebrotan de ahí después de un fuego o de una corta al pie, y por eso el monte mediterráneo se regenera con una rapidez que sorprende. La brotación de cepa es el motivo de que un arbusto helado hasta el suelo en enero pueda estar hecho una mata en julio.
Rizomas, tubérculos y bulbos. El órgano subterráneo de reserva es a la vez despensa y yemero. Un Agapanthus, una Canna, un lirio, un Zantedeschia, una Hemerocallis o unas anémonas pueden perder toda la parte aérea en una helada y salir intactos en la siguiente estación. Con las plantas de bulbo el matiz es distinto y muy importante: el bulbo contiene ya formados los órganos del año siguiente, de modo que si se corta la hoja verde antes de que amarillee —el error clásico con narcisos y tulipanes en un césped— no muere, pero se queda sin recargar reservas y no florecerá.
Raíces gemíferas. Un cuarto grupo produce brotes directamente desde las raíces, a metros de distancia del pie. Es lo que hacen el chopo blanco (Populus alba), la falsa acacia (Robinia pseudoacacia), el ailanto (Ailanthus altissima), el zumaque (Rhus), la paulonia, el ciruelo mirobolano y el cerezo. La capacidad tiene un lado incómodo: cortar el tronco de un ailanto o de una robinia no lo elimina, lo multiplica, porque desaparece la inhibición hormonal y la raíz responde con decenas de brotes en toda la parcela.
Lo que no vuelve
Frente a esa capacidad, hay daños de los que no se sale, y reconocerlos ahorra meses de riego a un cadáver.
Raíz podrida. El exceso de agua no mata por ahogo directo, sino por dos vías: el suelo saturado deja sin oxígeno a las raíces, que necesitan respirar, y esa anoxia favorece a oomicetos como Phytophthora y Pythium, que digieren la corteza radical. La raíz afectada se vuelve blanda, marrón o negra, huele a cieno y su corteza se desprende como un guante dejando el cilindro central desnudo. Ese tejido no se regenera. Si queda parte del sistema radical sano, un trasplante a sustrato nuevo, drenante, con reducción de la parte aérea para equilibrar y riego muy medido puede salvarla. Si la podredumbre ha llegado al cuello, no.
Cuello dañado. El cuello es la zona de transición entre tallo y raíz, y por ella pasa absolutamente todo el transporte de la planta. Un anillo de tejido muerto ahí —por pudrición, por enterrarlo al plantar, por un golpe de desbrozadora, por un tutor mal atado que estrangula— equivale a un corte de carretera. La planta puede tardar semanas o un año entero en manifestarlo, pero está sentenciada. La prueba es directa: apretar la base con el pulgar. Si cede, se hunde o la corteza se desprende, se acabó.
Tallo suculento colapsado. En cactus y crasas, el tejido acuoso interior no tiene resistencia estructural una vez que la bacteria o el hongo lo ha licuado. Un cactus con la base blanda, oscura y traslúcida no se recupera: la pudrición asciende por el interior más rápido de lo que se ve por fuera. La única salida es amputar por encima de la zona afectada, cortando en tejido completamente sano y blanco, dejar secar el corte al aire durante una o dos semanas hasta que forme callo, y reenraizar la parte superior como esqueje. Lo de abajo se tira.
Hoja quemada. Una hoja es un órgano determinado: crece hasta su tamaño definitivo y ahí termina. No tiene meristemo residual, así que un borde seco por golpe de sol, por exceso de sales, por flúor del agua del grifo o por quemadura de abono nunca reverdece. Esperar a que una punta marrón vuelva a ponerse verde es esperar en balde. Lo que sí puede la planta es sacar hojas nuevas sanas, y ese es el indicador que hay que vigilar. Se recortan las partes secas por estética, con tijera limpia, siguiendo el contorno natural.
A esta lista hay que sumar las monocotiledóneas sin ramificación. Una palmera crece desde un único meristemo apical, el cogollo, situado en el centro de la corona. No tiene yemas de repuesto ni cambium. Si ese punto se pudre —por picudo rojo, por Phytophthora, por agua acumulada en la corona— la palmera está muerta aunque conserve todas las hojas verdes durante meses. La señal precoz es que la lanza central se tira con la mano. Lo mismo vale para Dracaena, Yucca o Cordyline en cuanto a que el rebrote solo puede venir de yemas del tallo o de la base, nunca de la punta perdida.
Las dos pruebas de campo
La prueba del rascado. Con la uña o con la punta de una navaja, se raspa un milímetro de corteza en una ramilla. Debajo debe aparecer una capa verde y húmeda: es el cambium vivo. Si sale marrón, seca y quebradiza, ese punto está muerto. La clave es hacerlo de forma escalonada: se empieza en la punta y se va bajando cada palmo hasta encontrar verde. Ese es el límite entre lo perdido y lo vivo, y ahí es donde hay que podar. Y hay que llegar hasta abajo antes de dictar sentencia: un rosal, una buganvilla, una lantana o un Plumbago pueden estar completamente marrones arriba y perfectamente verdes a diez centímetros del suelo.
La prueba del cuello. Presionar con firmeza la base del tallo a ras de tierra y girar suavemente la planta. Un cuello sano está duro y anclado. Uno perdido cede, se hunde bajo el pulgar, se descascarilla o gira en el hoyo como un lápiz en un vaso. Complementariamente, se aparta un poco de sustrato y se mira una raíz: sana es blanca o clara y firme; perdida es marrón, blanda y con la corteza deslizante.
La prueba de flexibilidad sirve de apoyo rápido: una ramilla viva se dobla; una muerta chasca y se parte en seco.
Cuánto esperar antes de tirarla
La paciencia tiene plazos concretos según de dónde deba venir el rebrote.
Tras una helada. No hay que tocar nada hasta pasado el riesgo de heladas: la parte seca protege del frío a lo que hay debajo, y podar en enero expone tejido tierno a la siguiente entrada de aire polar. Se limpia cuando el tiempo se estabiliza y se da margen hasta finales de mayo o junio. Los rebrotes de cepa son tardíos y perezosos. Una buganvilla, un hibisco o un Duranta helados en el interior peninsular han rebrotado con frecuencia en la primera quincena de junio.
Tras un exceso de riego. El plazo es de tres a seis semanas desde el trasplante a sustrato nuevo. Si en ese tiempo no hay brotación, no la habrá.
Un árbol podado en exceso. Los brotes epicórmicos aparecen entre seis y diez semanas después, en plena temporada de crecimiento. Si un árbol desmochado en primavera pasa todo el verano sin un solo brote, está muerto.
Bulbos, rizomas y tuberosas. Aquí hay que esperar la estación siguiente completa. Un agapanto, una Canna o una peonía sin señales en su momento habitual pueden estar simplemente descolocados por un otoño cálido; se comprueba desenterrando un fragmento y mirando si está firme y carnoso o hueco y mohoso.
Una palmera. Si la lanza central se ha extraído sin resistencia y el interior huele a fermentado, no hay espera que valga.
Mientras se espera, la regla es no ayudar de más. Una planta sin hojas no transpira y no consume casi agua: seguir regándola al ritmo de antes es la forma más segura de rematarla. Y abonar tejido dañado no lo repara; el nitrógeno solo sirve cuando ya hay brotes verdes creciendo, y aplicado antes fuerza un desarrollo blando que la planta no puede sostener.
En resumen
Una planta no cicatriza, compartimenta: aísla lo dañado y crece desde meristemos que ya tenía. Rebrota si conserva yemas epicórmicas bajo la corteza, cepa o lignotúber, rizoma, tubérculo o bulbo, o raíces gemíferas. No hay vuelta atrás cuando la raíz está podrida, el cuello anillado, el tallo suculento licuado, la hoja quemada —que jamás reverdece— o el cogollo de una palmera perdido. Se decide con la prueba del rascado, bajando ramilla a ramilla hasta encontrar cambium verde, y con la del cuello, que debe estar duro y anclado. Y se espera: hasta junio tras una helada, seis semanas tras una podredumbre, una estación entera con los bulbos, regando poquísimo mientras tanto.

