
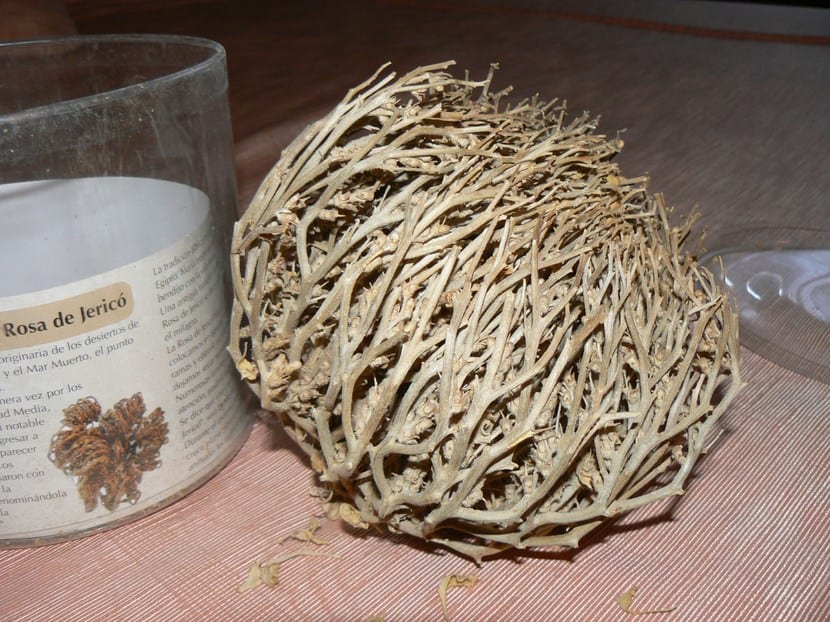
Una célula vegetal corriente muere cuando pierde en torno al 30 % de su agua. Las membranas se desorganizan, las proteínas se desnaturalizan y el contenido celular se convierte en una masa irreversible. Frente a ese límite general existe un puñado de plantas que bajan hasta el 5 % de agua residual, se quedan crujientes como papel durante meses o años y, al recibir lluvia, reconstruyen su metabolismo en cuestión de horas. La rosa de Jericó mexicana, Selaginella lepidophylla, es la representante popular de ese club, y merece la pena explicar el mecanismo, porque no es magia ni un truco de tienda.
Plantas poiquilohídricas: renunciar a controlar el agua
La estrategia dominante en el reino vegetal es la homeohidria: la planta mantiene su contenido hídrico dentro de un margen estrecho pase lo que pase fuera. Para eso sirven la cutícula cerosa, los estomas que se cierran, el sistema vascular que reparte agua desde la raíz y la vacuola que amortigua. Un roble regula. Un tomate regula. Cuando esa regulación falla, la planta se marchita y después muere.
La alternativa se llama poiquilohidria, y consiste en lo contrario: no regular nada. El tejido se equilibra con la humedad del aire, se hidrata cuando llueve y se seca cuando deja de llover, igual que una esponja o que un liquen. Las plantas poiquilohídricas son casi siempre pequeñas, porque un tejido que se deshidrata del todo no puede sostener un tronco ni un sistema conductor bajo tensión. Y solo una fracción de ellas ha dado el paso siguiente, que es sobrevivir a ese secado: son las plantas de resurrección, o plantas tolerantes a la desecación.
La cifra que define el fenómeno es el contenido hídrico relativo. Una hoja normal funciona por encima del 80 %, empieza a sufrir por debajo del 60 % y muere en torno al 30 %. Una planta de resurrección atraviesa esos umbrales sin daño y se estabiliza entre el 5 y el 10 %, un valor comparable al de una semilla guardada en un sobre.
Qué ocurre dentro de la célula mientras se seca
El agua no es solo el disolvente donde flotan las cosas. Rodea físicamente cada molécula de la bicapa lipídica y cada proteína, y esa capa de hidratación es la que mantiene las estructuras en su sitio. Si el agua se va sin más, los fosfolípidos de la membrana se acercan entre sí, pasan de fase fluida a fase gel y, al rehidratarse, se rompen: la célula pierde su contenido en cuanto vuelve el agua. Ese es el punto exacto donde muere una planta normal, y no durante el secado, sino al mojarla otra vez.
Las plantas de resurrección resuelven el problema con varias piezas que actúan a la vez.
Azúcares que ocupan el sitio del agua. Durante el secado, la célula acumula cantidades enormes de sacarosa y, en algunos grupos, también de trehalosa, hasta alcanzar entre el 10 y el 40 % del peso seco. Esos disacáridos tienen grupos hidroxilo dispuestos de manera que pueden formar puentes de hidrógeno con las cabezas polares de los fosfolípidos y con la superficie de las proteínas; es decir, sustituyen al agua molécula a molécula y mantienen el espaciado original de la membrana. Es la llamada hipótesis de la sustitución del agua, y está bien documentada por espectroscopia.
El estado vítreo. Al concentrarse, esa mezcla de azúcares no cristaliza: se vuelve un líquido de viscosidad extrema, un vidrio biológico. Dentro de un vidrio, la difusión molecular prácticamente se detiene. Las reacciones químicas que degradarían la célula durante los meses de sequía no pueden avanzar porque las moléculas no llegan a encontrarse. La célula queda en pausa física, no metabólica. Ese mismo principio explica que una semilla germine después de décadas.
Proteínas LEA. Las siglas vienen de late embryogenesis abundant, porque se describieron primero en embriones de semilla a punto de secarse. Son proteínas muy hidrófilas y sin estructura definida en solución; al perder agua adoptan hélices y se colocan entre las macromoléculas como cuñas, impidiendo que se agreguen unas con otras. Funcionan a la vez como chaperonas moleculares y como formadoras del vidrio junto con los azúcares. Los genes LEA aparecen sobreexpresados en todas las plantas de resurrección estudiadas.
Reorganización mecánica. Un tejido que pierde el 95 % de su volumen de agua tendría que colapsar y desgarrarse. No lo hace porque la pared celular está modificada: en Craterostigma y en varias especies emparentadas es rica en arabinanos flexibles y se pliega hacia dentro en acordeón, de forma ordenada y reversible, en lugar de romperse. El citoesqueleto interior se despolimeriza de manera controlada durante el secado y se vuelve a montar al rehidratar, y las vacuolas grandes se fragmentan en muchas vacuolas pequeñas llenas de sustancias de reserva, lo que reduce la deformación.
Control del daño oxidativo. Es la parte más costosa. Un cloroplasto iluminado y sin agua sigue capturando fotones que ya no puede usar, y produce oxígeno singlete y radicales que destrozan lípidos y proteínas. Hay dos soluciones. Unas especies mantienen la clorofila y protegen el aparato fotosintético con antioxidantes, carotenoides y proteínas ELIP, y por eso reverdecen en horas: se llaman homeoclorofílicas. Otras desmontan la clorofila y los tilacoides antes de secarse, lo que elimina el riesgo pero obliga a reconstruir el cloroplasto entero al rehidratarse; son poiquiloclorofílicas y tardan días en volver a fotosintetizar.
Quién más lo hace
La tolerancia a la desecación en tejido vegetativo está repartida por linajes muy separados, lo que indica que ha aparecido varias veces de forma independiente. El grupo reúne entre 300 y 400 especies de plantas vasculares, una cifra minúscula frente a las 350.000 conocidas.
Licofitas. Selaginella lepidophylla, del desierto de Chihuahua, y otras selaginelas de roquedo. Son homeoclorofílicas, y su bola enrollada combina el movimiento higroscópico de las ramas con la supervivencia real del tejido.
Gesneriáceas europeas. Aquí está el dato local. Ramonda myconi, la oreja de oso pirenaica, vive en fisuras de roca caliza umbría del Pirineo y el prepirineo catalán y aragonés, y es una auténtica planta de resurrección: sus rosetas de hoja rugosa se secan hasta quedar pardas y arrugadas en los veranos duros y recuperan turgencia y color en pocos días con las lluvias de septiembre. Son parientes suyas Haberlea rhodopensis y Ramonda serbica, de los Balcanes, restos de una flora terciaria. Que un fenómeno asociado al desierto africano pueda observarse en una umbría del Pirineo resulta llamativo, y explica por qué estas especies han sido tan estudiadas en laboratorios europeos.
Angiospermas africanas. Myrothamnus flabellifolius, un arbusto leñoso del sur de África que llega a metro y medio, es el ejemplar de mayor porte capaz de esto y el único arbusto verdaderamente resucitante conocido: se seca hasta parecer leña y rebrota entero. Craterostigma plantagineum, una escrofulariácea de suelos someros sobre roca, es el modelo genético clásico. Xerophyta y Barbacenia, de las veloziáceas, son poiquiloclorofílicas. Entre las gramíneas hay unas pocas, como Eragrostis nindensis y Oropetium thomaeum, y su existencia importa porque emparenta el fenómeno con los cereales.
Briófitos y líquenes. Aquí la tolerancia es la norma y no la excepción. Musgos como Tortula ruralis o los del género Syntrichia reanudan la fotosíntesis a los pocos minutos de mojarse, y cualquier liquen de una tapia castellana lleva medio año seco y quebradizo y verdea con la primera niebla. Se considera que la tolerancia a la desecación es un carácter ancestral de las plantas terrestres, heredado de las algas que colonizaron el suelo, que las plantas vasculares perdieron al desarrollar raíz, cutícula y estomas, y que unas pocas han recuperado después de forma secundaria.
La conexión con la semilla
La observación decisiva es que casi todas las plantas con semilla ya saben hacer esto, pero solo en el embrión. Una semilla ortodoxa —trigo, lechuga, pino— se seca hasta el 5 % de humedad durante su maduración, acumula sacarosa y proteínas LEA, entra en estado vítreo y aguanta años. El programa genético existe en el genoma, regulado por ácido abscísico y por factores de transcripción del tipo ABI3 y LEC.
Lo que caracteriza a una planta de resurrección no es haber inventado nada nuevo, sino haber reactivado ese programa embrionario en hojas y raíces adultas. Es una diferencia de regulación, no de repertorio. Y eso es exactamente lo que la vuelve interesante para quien trabaja en mejora vegetal.
Por qué la investigación agronómica lleva décadas detrás de esto
La sequía es el principal factor de pérdida de cosecha en el mundo, y en la España mediterránea e interior marca el límite práctico de casi cualquier cultivo de secano. La tolerancia clásica a la sequía consiste en aguantar más: raíz más profunda, cierre estomático eficiente, ciclo más corto. La tolerancia a la desecación es otra categoría, porque no consiste en evitar el secado sino en sobrevivirlo.
Las líneas de trabajo son varias. La transferencia de genes concretos —LEA, enzimas de síntesis de trehalosa, factores de transcripción del tipo DREB— a cereales y a otros cultivos ha producido plantas con mejor comportamiento bajo estrés hídrico moderado, aunque ninguna se acerca ni de lejos a una resurrección completa: el carácter depende de cientos de genes coordinados y no de un interruptor. La secuenciación de Oropetium thomaeum en 2015, una gramínea resucitante de genoma muy pequeño, ofreció por primera vez el catálogo completo de lo que hace falta. Y hay una vía más modesta y quizá más realista: identificar en el arroz o en el maíz los genes de tolerancia que ya poseen para la semilla y buscar la manera de expresarlos en la hoja durante un episodio de sequía.
Fuera de la agricultura, el mismo conocimiento se aplica a la conservación en seco de material biológico. La estabilización de vacunas, enzimas, plaquetas y cultivos celulares mediante trehalosa y azúcares vitrificantes, que permitiría transportarlos sin cadena de frío, procede directamente del estudio de la anhidrobiosis en plantas, en tardígrados y en algunos invertebrados.
El coste, y por qué no todas las plantas lo hacen
Si fuera gratis sería universal. No lo es. Mantener el equipo de protección, sintetizar cantidades masivas de azúcar y desmontar y volver a montar orgánulos consume energía que no se dedica a crecer. Las plantas de resurrección son pequeñas, de crecimiento lento y malas competidoras: viven en roquedos, inselbergs y fisuras donde no las desplaza nadie, porque en un suelo fértil cualquier hierba corriente las ahoga.
Hay además un requisito operativo poco intuitivo: la velocidad de secado importa tanto como el hecho de secarse. El programa de protección necesita tiempo para ejecutarse, entre unas horas y varios días según la especie. Una planta de resurrección sometida a un secado brusco, con aire muy seco y a pleno sol, puede morir por no haber podido completar la síntesis de azúcares y de LEA. Es un detalle que explica fracasos domésticos con Selaginella: los ciclos repetidos y rápidos la desgastan mucho más que un secado lento y espaciado.
Una nota sobre el nombre
Con la etiqueta de rosa de Jericó se venden dos plantas sin ningún parentesco, y solo una de ellas resucita de verdad: la otra, Anastatica hierochuntica, es una crucífera muerta cuyo esqueleto se abre por higroscopia pura. Quien busque las claves para distinguirlas en la tienda y los cuidados de cada una encontrará ese asunto tratado a fondo en el artículo dedicado a las dos rosas de Jericó. Aquí basta con retener que solo la selaginela pertenece al fenómeno descrito en estas líneas.
En resumen
La tolerancia a la desecación es la capacidad de perder más del 90 % del agua celular y recuperarse, y la tienen entre 300 y 400 especies vasculares repartidas por linajes muy distantes. Funciona sustituyendo el agua por sacarosa y trehalosa alrededor de membranas y proteínas, formando un estado vítreo que paraliza la química interna, desplegando proteínas LEA que impiden la agregación, plegando la pared celular de forma ordenada y controlando el daño oxidativo del cloroplasto. Lo practican Selaginella lepidophylla, la Ramonda myconi de los Pirineos, Myrothamnus flabellifolius, Craterostigma y la mayoría de musgos y líquenes, y es el mismo programa que emplea cualquier semilla seca, reactivado en tejido adulto. De ahí el interés agronómico: entender ese programa es la vía más prometedora hacia cultivos capaces de resistir sequías extremas, y de paso hacia la conservación de material biológico sin frío. El precio que pagan estas plantas es crecer despacio y vivir donde nadie compite.

